Нервное возбуждение
Задание 3. «Нервное возбуждение»
А. Ходжкин. и Э. Хаксли получили Нобелевскую премию по физиологии и медицине 1963 г. «за открытия, касающиеся ионных механизмов, участвующих в возбуждении и торможении в периферическом и центральном участках мембраны нервной клетки».
Основой жизнедеятельности живых организмов, во многом, являются процессы, протекающие в мембранах клеток. В данной задаче вам необходимо рассмотреть некоторые подходы к описанию процесса возбуждения нервных клеток в рамках примитивной модели.
Основная идея теории возбуждения клетки заключается описании процессов переноса ионов через мембрану. Проницаемость
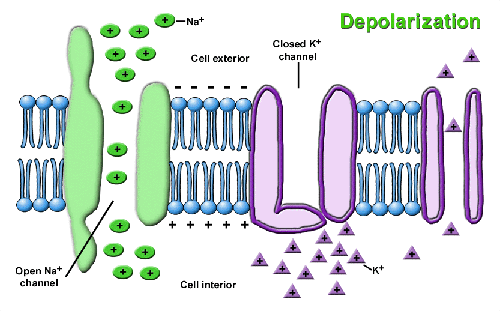
мембраны различна для различных ионов, кроме того в мембрану встроены большие белковые молекулы, играющие роль насосов, способных переносить ионы определенного типа с одной стороны мембраны на другую (затрачивая на это энергию). Благодаря наличию этих насосов – каналов, концентрации ионов различны с разных сторон от мембраны, и как следствие появляется разность электрических потенциалов между противоположными стенками мембраны.
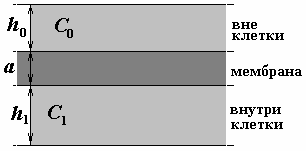
Еще более упростим модель. Будем считать, что мембрана является плоскопараллельной пластинкой толщиной \(a\). Снаружи клетки находится слой жидкости (воды) толщиной \(h_0\), а внутриклеточное пространство моделируется слоем жидкости толщиной \(h_1\). Диэлектрические проницаемости всех сред будем считать равными единице. Концентрации частиц вне клетки будем обозначать \(C_0\), а внутри - \(C_1\) (при необходимости будем добавлять индексы, указывающие тип частиц).
1. Диффузия.
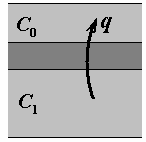
Рассмотрим движение незаряженных молекул через мембрану без «насосов» (считаем, что электрических зарядов в природе не существует). Плотность диффузионного потока частиц \(q\) (число частиц пересекающих единицу площади мембраны в единицу времени) пропорциональна разности концентраций этих частиц с противоположных сторон мембраны
\[q = g\Delta C\tag{1}\]
где \(g\) - коэффициент пропорциональности, который назовем проницаемостью мембраны для данных частиц.
Пусть в начальный момент времени концентрации рассматриваемых частиц с разных сторон мембраны различны. Оцените время, в течение которого концентрации частиц выровняются.
2. Вынужденный перенос и диффузия.
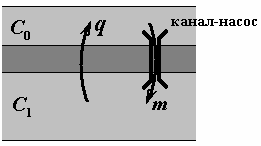
Рассмотрим теперь мембраны в которую встроены каналы-насосы принудительно переносящие рассматриваемые молекулы внутрь клетки. Пусть эти каналы равномерно распределены по поверхности мембраны, причем на единицу площади приходится \(n\) каналов, каждый из которых переносит в единицу времени \(m\) молекул из внеклеточного пространства внутрь клетки.
Определите установившуюся разность концентраций \(\Delta\overline{C} = C_0 - C_1\) между разными сторонами мембраны.
3. Электрическое поле.
Далее будем считать, что рассматриваемые частицы являются ионами калия \(K^+\). Пусть концентрация ионов вне клетки равна \(C_0\), а внутри нее \(C_1\). Найдите разность потенциалов\(^3\) между стенками мембраны \(\Delta\varphi\), пренебрегая наличием ионов внутри мембраны.
4. Перенос ионов.
При наличии электрического поля помимо потока ионов через мембрану, обусловленного разностью концентрации, появляется поток ионов, обусловленный наличием электрического поля. В этом случае суммарная плотность потока ионов через мембрану определяется формулой
\[q = g\Delta C + bC_i\Delta\varphi,\tag{2}\]
где \(\Delta\varphi\) - разность потенциалом между стенками мембраны, \(C_i\) - концентрация ионов с той стороны мембраны, от которой начинается движение ионов через мембрану под действием электрического поля (для положительных ионов со стороны большего потенциала).
Найдите установившуюся разность потенциалов между стенками мембраны.
—
Используйте все характеристики мембраны, введенные в предыдущих пунктах. При равенстве концентраций с разных сторон от мембраны, эти концентрации равны \(C_e\).
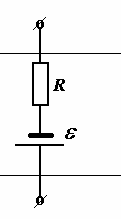
5. Эквивалентная схема. Процессы протекания тока через мембрану могут быть описаны с помощью эквивалентной электрической схемы. Свяжите параметры этой схемы ЭДС источника и сопротивление цепи с параметрами реальной мембраны и характеристиками ионных потоков.
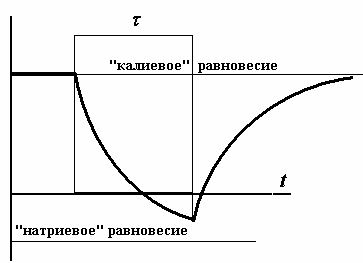
6. Как показали А. Ходжкин. и Э. Хаксли для объяснения возникновения нервных импульсов необходимо принимать во внимание, как минимум два типа ионов. Вторым основным типов ионов являются ионы натрия \(Na^+\). В мембране также присутствуют натриевые каналы – насосы, принудительно переносящие ионы натрия из клетки наружу. Будем считать, что для обоих типов ионов известны параметры эквивалентных схем \(R_K, \varepsilon_K\) и \(R_{Na}, \varepsilon_{Na}\) (\(\varepsilon_{Na} > \varepsilon_K\)). Пусть изначально все натриевые каналы закрыты, а затем в некоторый момент времени открываются на небольшой промежуток времени \(\tau\). Опишите, как будет изменяться разность потенциалов между стенками мембраны с течением времени. Постройте примерный график этой зависимости.
Если вы все решили правильно, то полученный график и будет моделировать временной ход нервного импульса!}
\textsuperscript{3} В реальности внутри и вне клетки присутствуют ионы и других типов, которые также вносят свой вклад в создание поля. Однако их концентрации практически не изменяются поэтому основную роль играют потенциалы изменяющихся полей, создаваемых теми ионами, концентрации которых изменяются. Поэтому здесь и в дальнейшем принимаем во внимание только их и поля создаваемые ими.
▶ПодсказкаСкрыть: подсказка
ПодсказкаДиффузионный поток через мембрану пропорционален разности концентраций, поэтому разность убывает экспоненциально. Заряды ионов по обе стороны мембраны создают поле плоского конденсатора, а в установившемся режиме потоки уравновешены.
▶ОтветСкрыть: ответ
Ответ1) \(\tau=\dfrac{h_0h_1}{g(h_0+h_1)}\); 2) \(\Delta\overline C=\dfrac{nm}{g}\); 3) \(\Delta\varphi=\dfrac{ea(C_1h_1-C_0h_0)}{2\varepsilon_0}\); 4) стационарная разность потенциалов — положительный корень квадратного уравнения (10) официального решения; 5, 6) схема: источник с ЭДС, равной равновесному потенциалу, и сопротивлением \(R\), емкость слоёв \(C\), время \(RC\).
▶РешениеСкрыть: решение
Решение1. Диффузия.
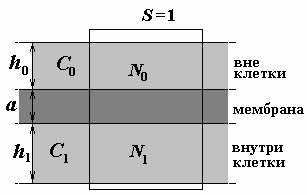
Выделим параллелепипед с единичной площадью основания, боковые стороны которого перпендикулярны плоскости мембраны. Изменение чисел части в вне клетки и внутри нее (в пределах выделенного параллелепипеда) описывается уравнениями
\[\begin{aligned} \frac{\Delta N_0}{\Delta t} &= -g(C_0 - C_1) \\ \frac{\Delta N_1}{\Delta t} &= -g(C_1 - C_0) \end{aligned} .\tag{1}\]
Учитывая связь меду числом частиц и соответствующей концентрацией \(N_{0{,}1} = C_{0{,}1} h_{0{,}1}\), перепишем уравнения (1) в виде
\[\begin{array} { c } { { \displaystyle h _ { 0 } \frac { \Delta C _ { 0 } } { \Delta t } = - g ( C _ { 0 } - C _ { 1 } ) } } \\ { { \displaystyle h _ { 1 } \frac { \Delta C _ { 1 } } { \Delta t } = - g ( C _ { 1 } - C _ { 0 } ) } } \end{array} ,\]
из которых следует уравнение, описывающие изменение разности концентраций
\[\frac { \Delta ( C _ { 0 } - C _ { 1 } ) } { \Delta t } = - g \left( \frac { 1 } { h _ { 0 } } + \frac { 1 } { h _ { 1 } } \right) ( C _ { 0 } - C _ { 1 } ) .\tag{2}\]
Из этого уравнения следует, что характерное время установления равновесия определяется формулой
\[\tau = \frac { 1 } { \displaystyle g \left( \frac { 1 } { h _ { 0 } } + \frac { 1 } { h _ { 1 } } \right) } = \frac { h _ { 0 } h _ { 1 } } { g ( h _ { 0 } + h _ { 1 } ) } .\tag{3}\]
2. Вынужденный перенос и диффузия.
При наличии вынужденного переноса в уравнениях (1) появятся дополнительные слагаемые
\[\begin{array} { c } { { \displaystyle \frac { \Delta N _ { 0 } } { \Delta t } = - g ( C _ { 0 } - C _ { 1 } ) - n m } } \\ { { \displaystyle \frac { \Delta N _ { 1 } } { \Delta t } = - g ( C _ { 1 } - C _ { 0 } ) + n m } } \end{array} .\tag{4}\]
Из этих уравнений следует, что в стационарном режиме (когда концентрации частиц не изменяются со временем) разность концентраций равна
\[\Delta \overline { { C } } = C _ { 1 } - C _ { 0 } = \frac { n m } { g } .\tag{5}\]
3. Электрическое поле.
Используя известные формулы для напряженностей полей, создаваемых плоским слоями, можно записать выражение для напряженности однородного поля внутри мембраны
\[E = \frac { e ( C _ { 1 } h _ { 1 } - C _ { 0 } h _ { 0 } ) } { 2 \varepsilon _ { 0 } } .\tag{6}\]
где \(e\) - заряд электрона, положительное направление поля - из клетки наружу.
Тогда разность потенциалов равна
\[\Delta \varphi = E a = \frac { e a ( C _ { 1 } h _ { 1 } - C _ { 0 } h _ { 0 } ) } { 2 \varepsilon _ { 0 } } .\tag{7}\]
4. Перенос ионов.
Будем считать, что концентрация ионов внутри клетки превышает их концентрацию вне ее. В этом случае уравнения баланса числа частиц принимают вид
\[\begin{array} { c } { { \displaystyle \frac { \Delta N _ { 0 } } { \Delta t } = - g ( C _ { 0 } - C _ { 1 } ) - n m + b C _ { 1 } \Delta \varphi } } \\ { { \displaystyle \frac { \Delta N _ { 1 } } { \Delta t } = - g ( C _ { 1 } - C _ { 0 } ) + n m - b C _ { 1 } \Delta \varphi } } \end{array} .\tag{8}\]
В стационарном режиме эти уравнения равносильны, поэтому для определения стационарных концентраций, к ним необходимо добавить условие постоянства числа частиц
\[C_0 h_0 + C_1 h_1 = C_e (h_0 + h_1).\tag{9}\]
Теперь из уравнений (7)-(9) нам необходимо найти выражение для разности потенциалов \(\Delta \varphi\). Для упрощения расчетов все концентрации, фигурирующие в этих уравнениях, выразим через искомую разность потенциалов. Для чего запишем
\[C_0 h_0 + C_1 h_1 = C_e (h_0 + h_1)\]
\[C_1 h_1 - C_0 h_0 = \frac{2 \varepsilon_0}{ea} \Delta \varphi\]
Теперь складывая и вычитая эти выражения, получим
\[C_1 = C_e \frac{(h_0 + h_1)}{2 h_1} + \frac{2 \varepsilon_0}{ea h_1} \Delta \varphi\]
\[C_0 = C_e \frac{(h_0 + h_1)}{2 h_0} - \frac{2 \varepsilon_0}{ea h_0} \Delta \varphi\]
Подставим эти выражения в уравнения (8) в стационарном режиме, в результате получим квадратное уравнение для определения стационарной разности потенциалов
\[-g \left( C_e \frac{(h_0 + h_1)}{2 h_0} - \frac{2 \varepsilon_0}{ea h_0} \Delta \varphi - C_e \frac{(h_0 + h_1)}{2 h_1} - \frac{2 \varepsilon_0}{ea h_1} \Delta \varphi \right) - nm + b \left( C_e \frac{(h_0 + h_1)}{2 h_1} + \frac{2 \varepsilon_0}{ea h_1} \Delta \varphi \right) \Delta \varphi = 0\]
Путем алгебраических преобразований преобразуем его к стандартному виду
\[\frac{2 \varepsilon_0 b}{ea h_1} (\Delta \varphi)^2 + \left( \frac{2 \varepsilon_0 g (h_0 + h_1)}{ea h_0 h_1} + b C_e \frac{(h_0 + h_1)}{2 h_1} \right) \Delta \varphi - \left( nm + C_e g \frac{h_1^2 - h_0^2}{2 h_0 h_1} \right) = 0\tag{10}\]
Положительный корень которого и даст искомую разность потенциалов.
5. Эквивалентная схема.
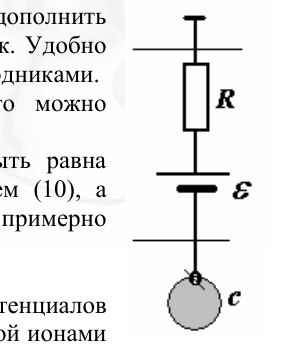
Конечно, указанную эквивалентную схему следует дополнить электрическими емкостями слоев жидкости вне и внутри клеток. Удобно моделировать эти слои не конденсаторами, а уединенными проводниками. Если же принять потенциал вне клетки равным нулю, то можно «обойтись» и одним уединенным проводником. В такой схеме очевидно, что эквивалентна ЭДС должна быть равна значению равновесного потенциала, определяемого уравнением (10), а величина \(RC\) соответствует времени установления равновесия, примерно определяемым формулой (3).
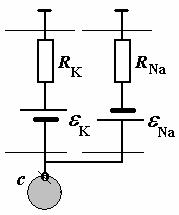
6. Когда натриевые каналы закрыты, то разность потенциалов определяется равновесной разностью потенциалов, обусловленной ионами калия (решением уравнения (10)). При открытии натриевых каналов В эквивалентную схему следует включить ЭДС, моделирующую натриевые насосы. В этом случае мембрана постепенно будет изменять свою поляризацию на противоположную, а разность потенциалов стремиться к равновесию, определяемому наличием двух ЭДС, то есть их разностью. Время перехода к этому равновесию будет меньше, так как сопротивление мембраны уменьшится. После закрывания натриевых каналов, мембрана система будет возвращаться к исходному состоянию с большим временем перехода. Схематически этот процесс показан на рисунке.
\textsuperscript{3} В реальности внутри и вне клетки присутствуют ионы и других типов, которые также вносят свой вклад в создание поля. Однако их концентрации практически не изменяются поэтому основную роль играют потенциалы изменяющихся полей, создаваемых теми ионами, концентрации которых изменяются. Поэтому здесь и в дальнейшем принимаем во внимание только их и поля создаваемые ими.
Прочитали решение — спросите себя, как можно было до этого додуматься. А через день-два решите задачу заново, не подглядывая.
Похожие задачи
- Задача 5.3.10 Савченко, №5.3.10
- Задача 5.3.13 Савченко, №5.3.13
- Остывание в разреженном газе Савченко, №5.3.14
- Хроматография IEPhO 2013/14, заключительный этап, 9 кл.
- Зонд с микротрещиной «Шаг в будущее» 2015/16, заключительный этап, 10 кл.
- Столкновения молекул Ведомственная 2018/19, заключительный этап, 10 кл.